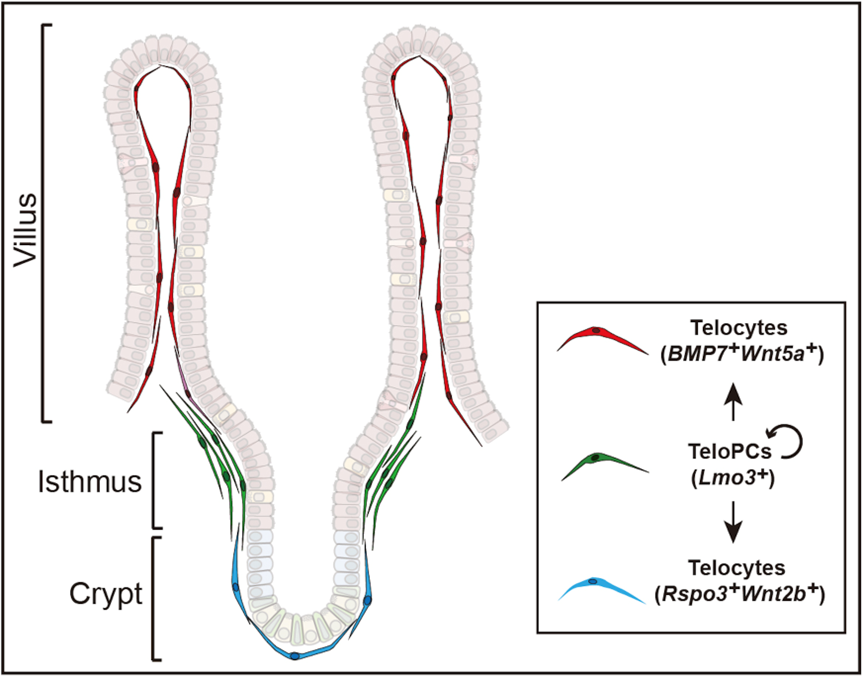
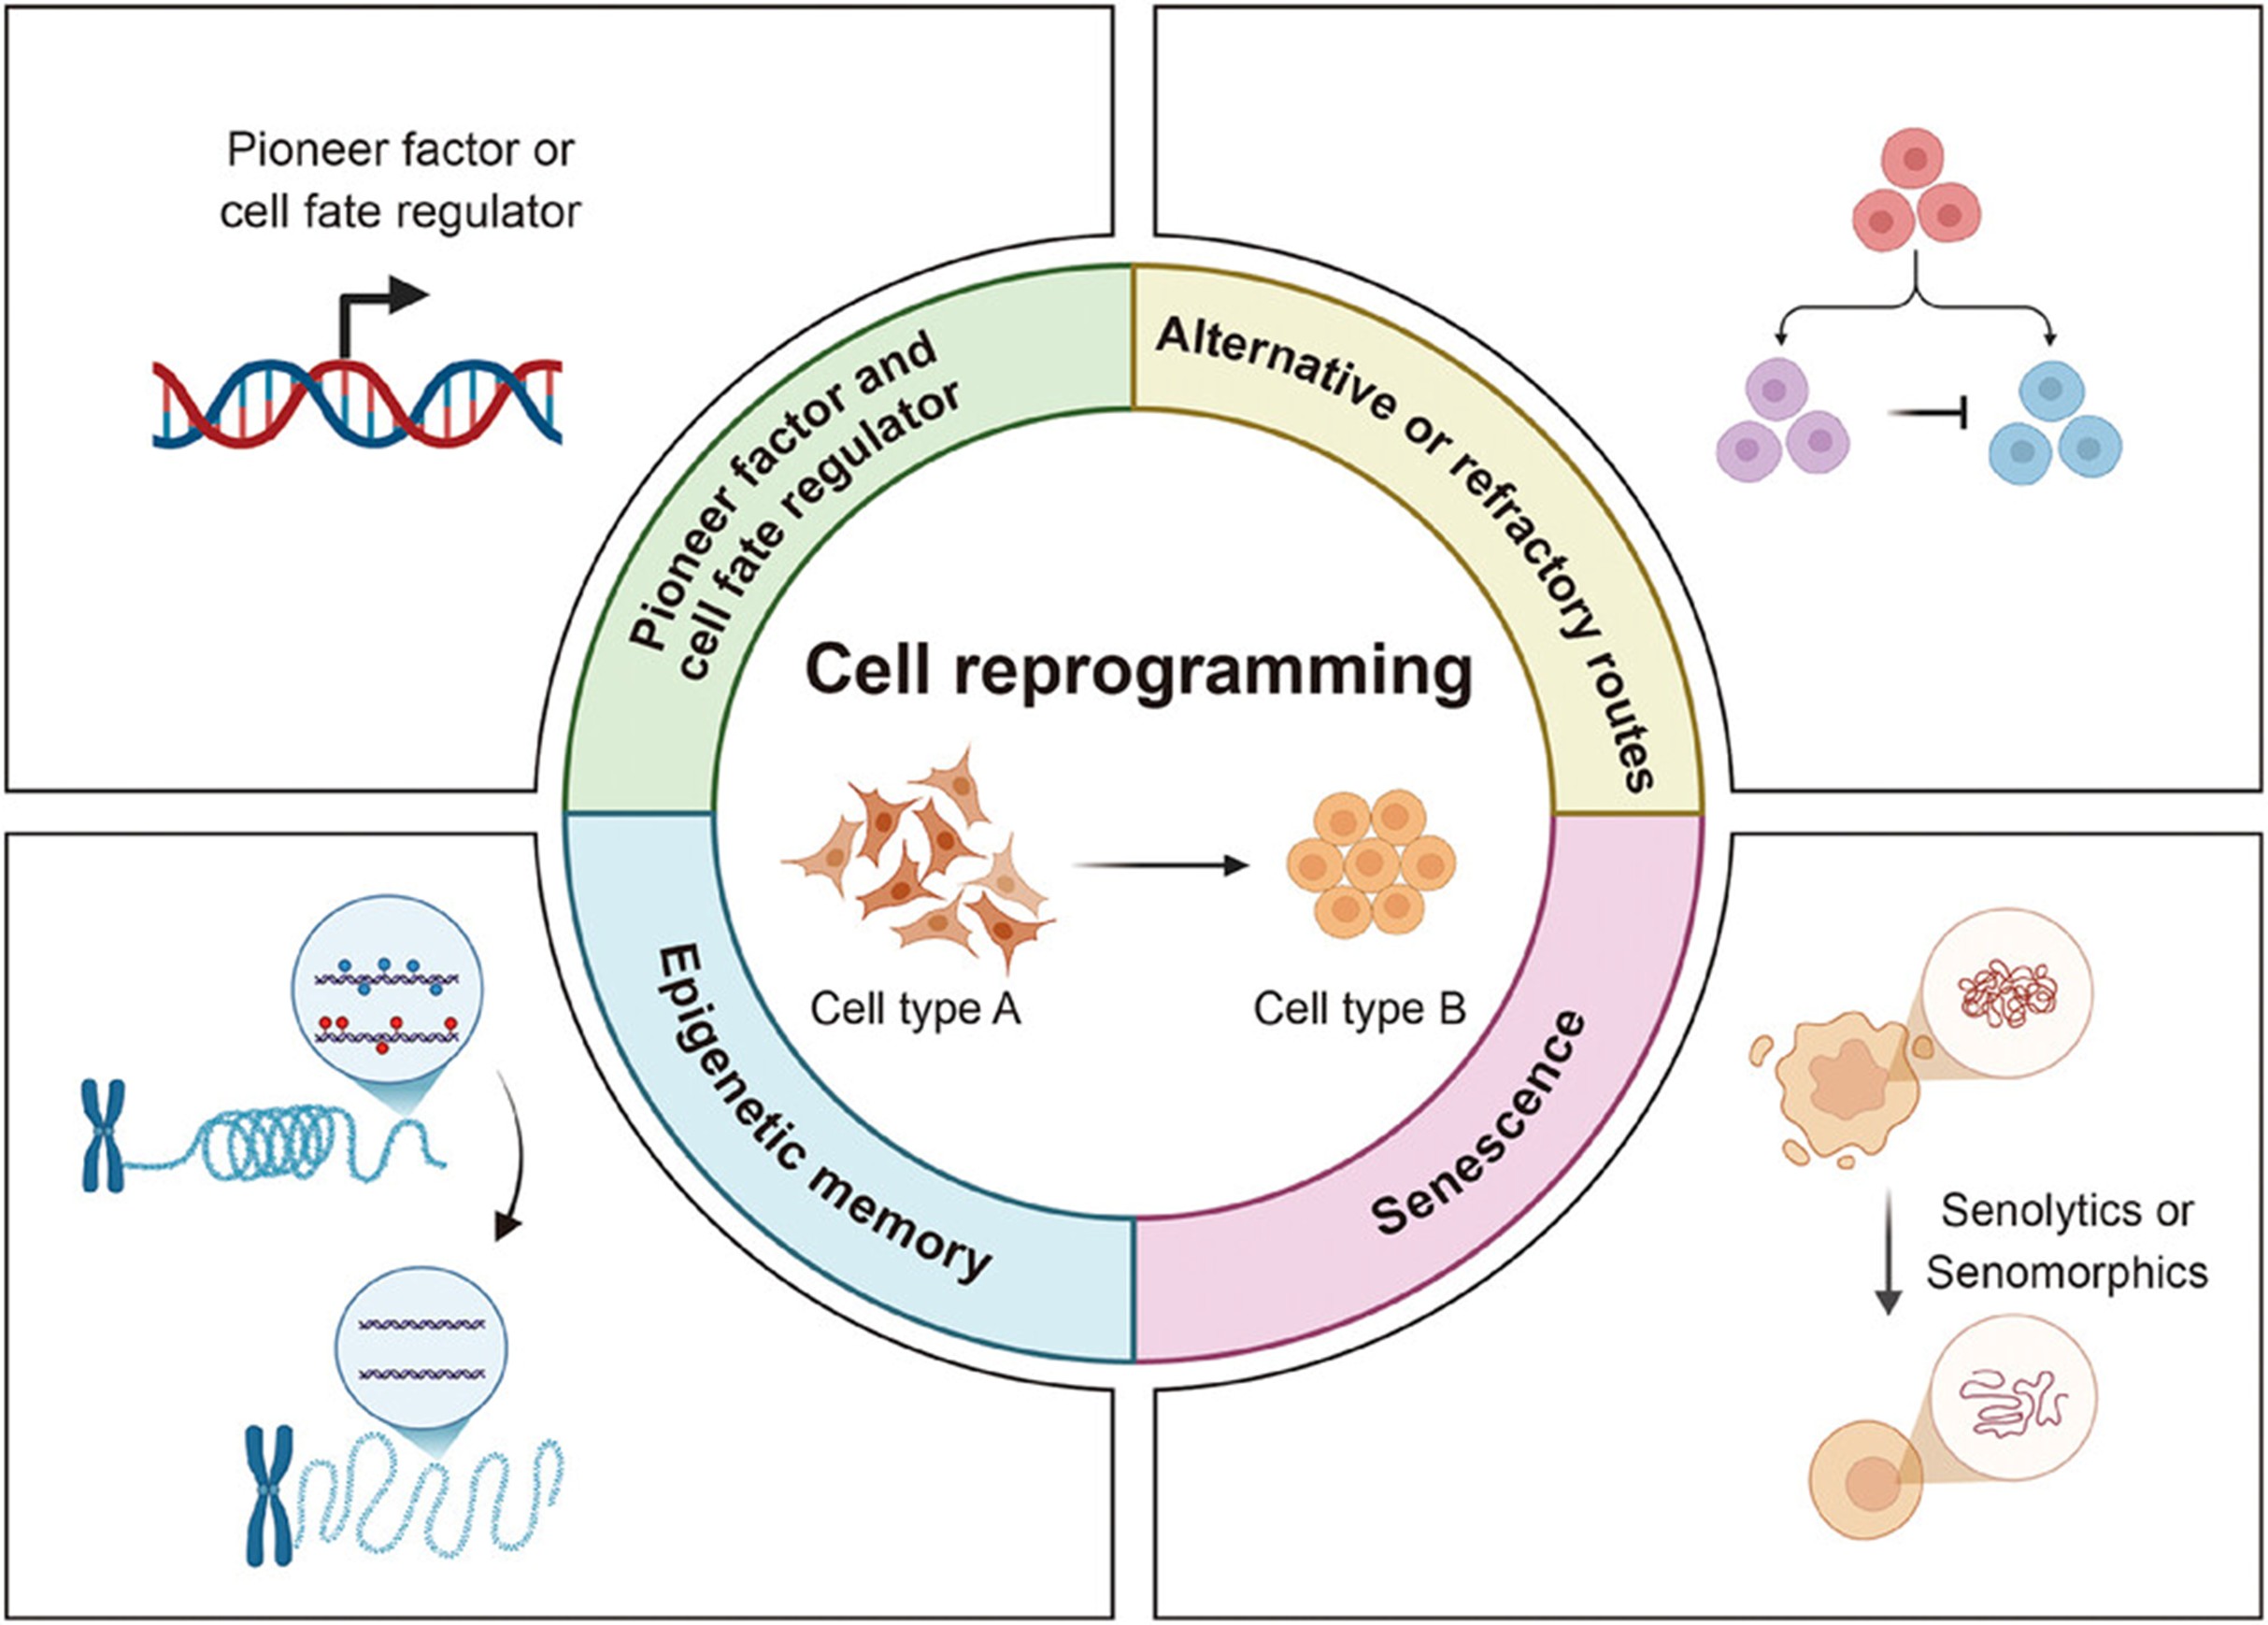
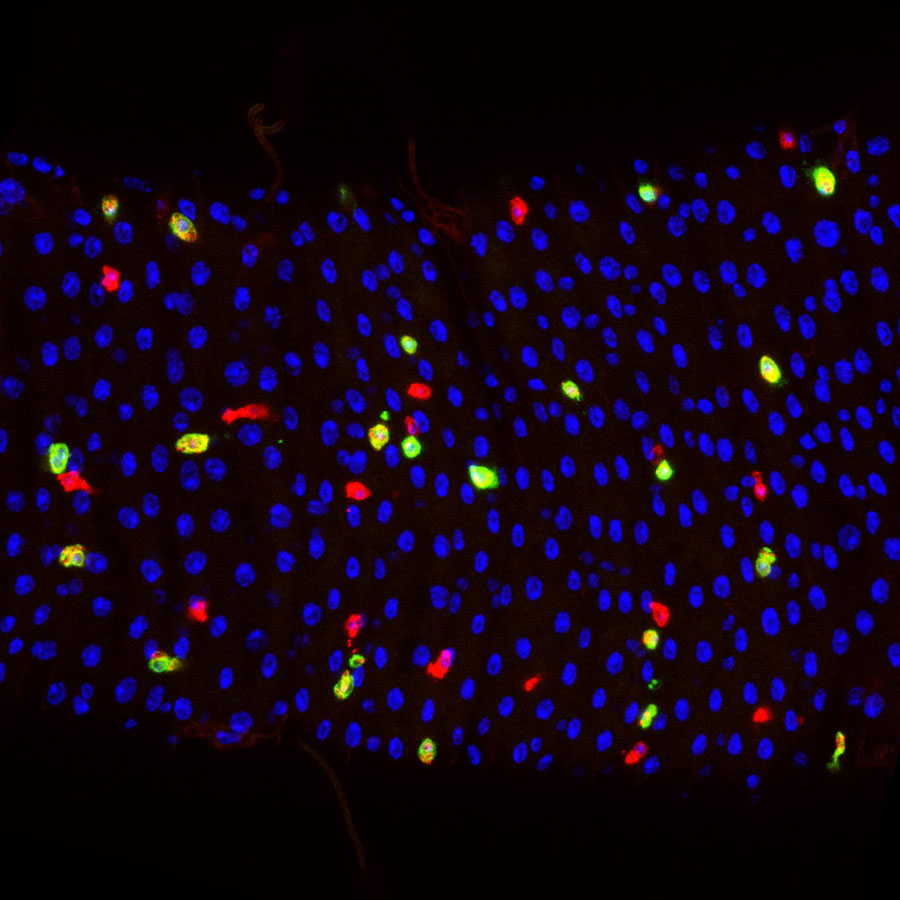
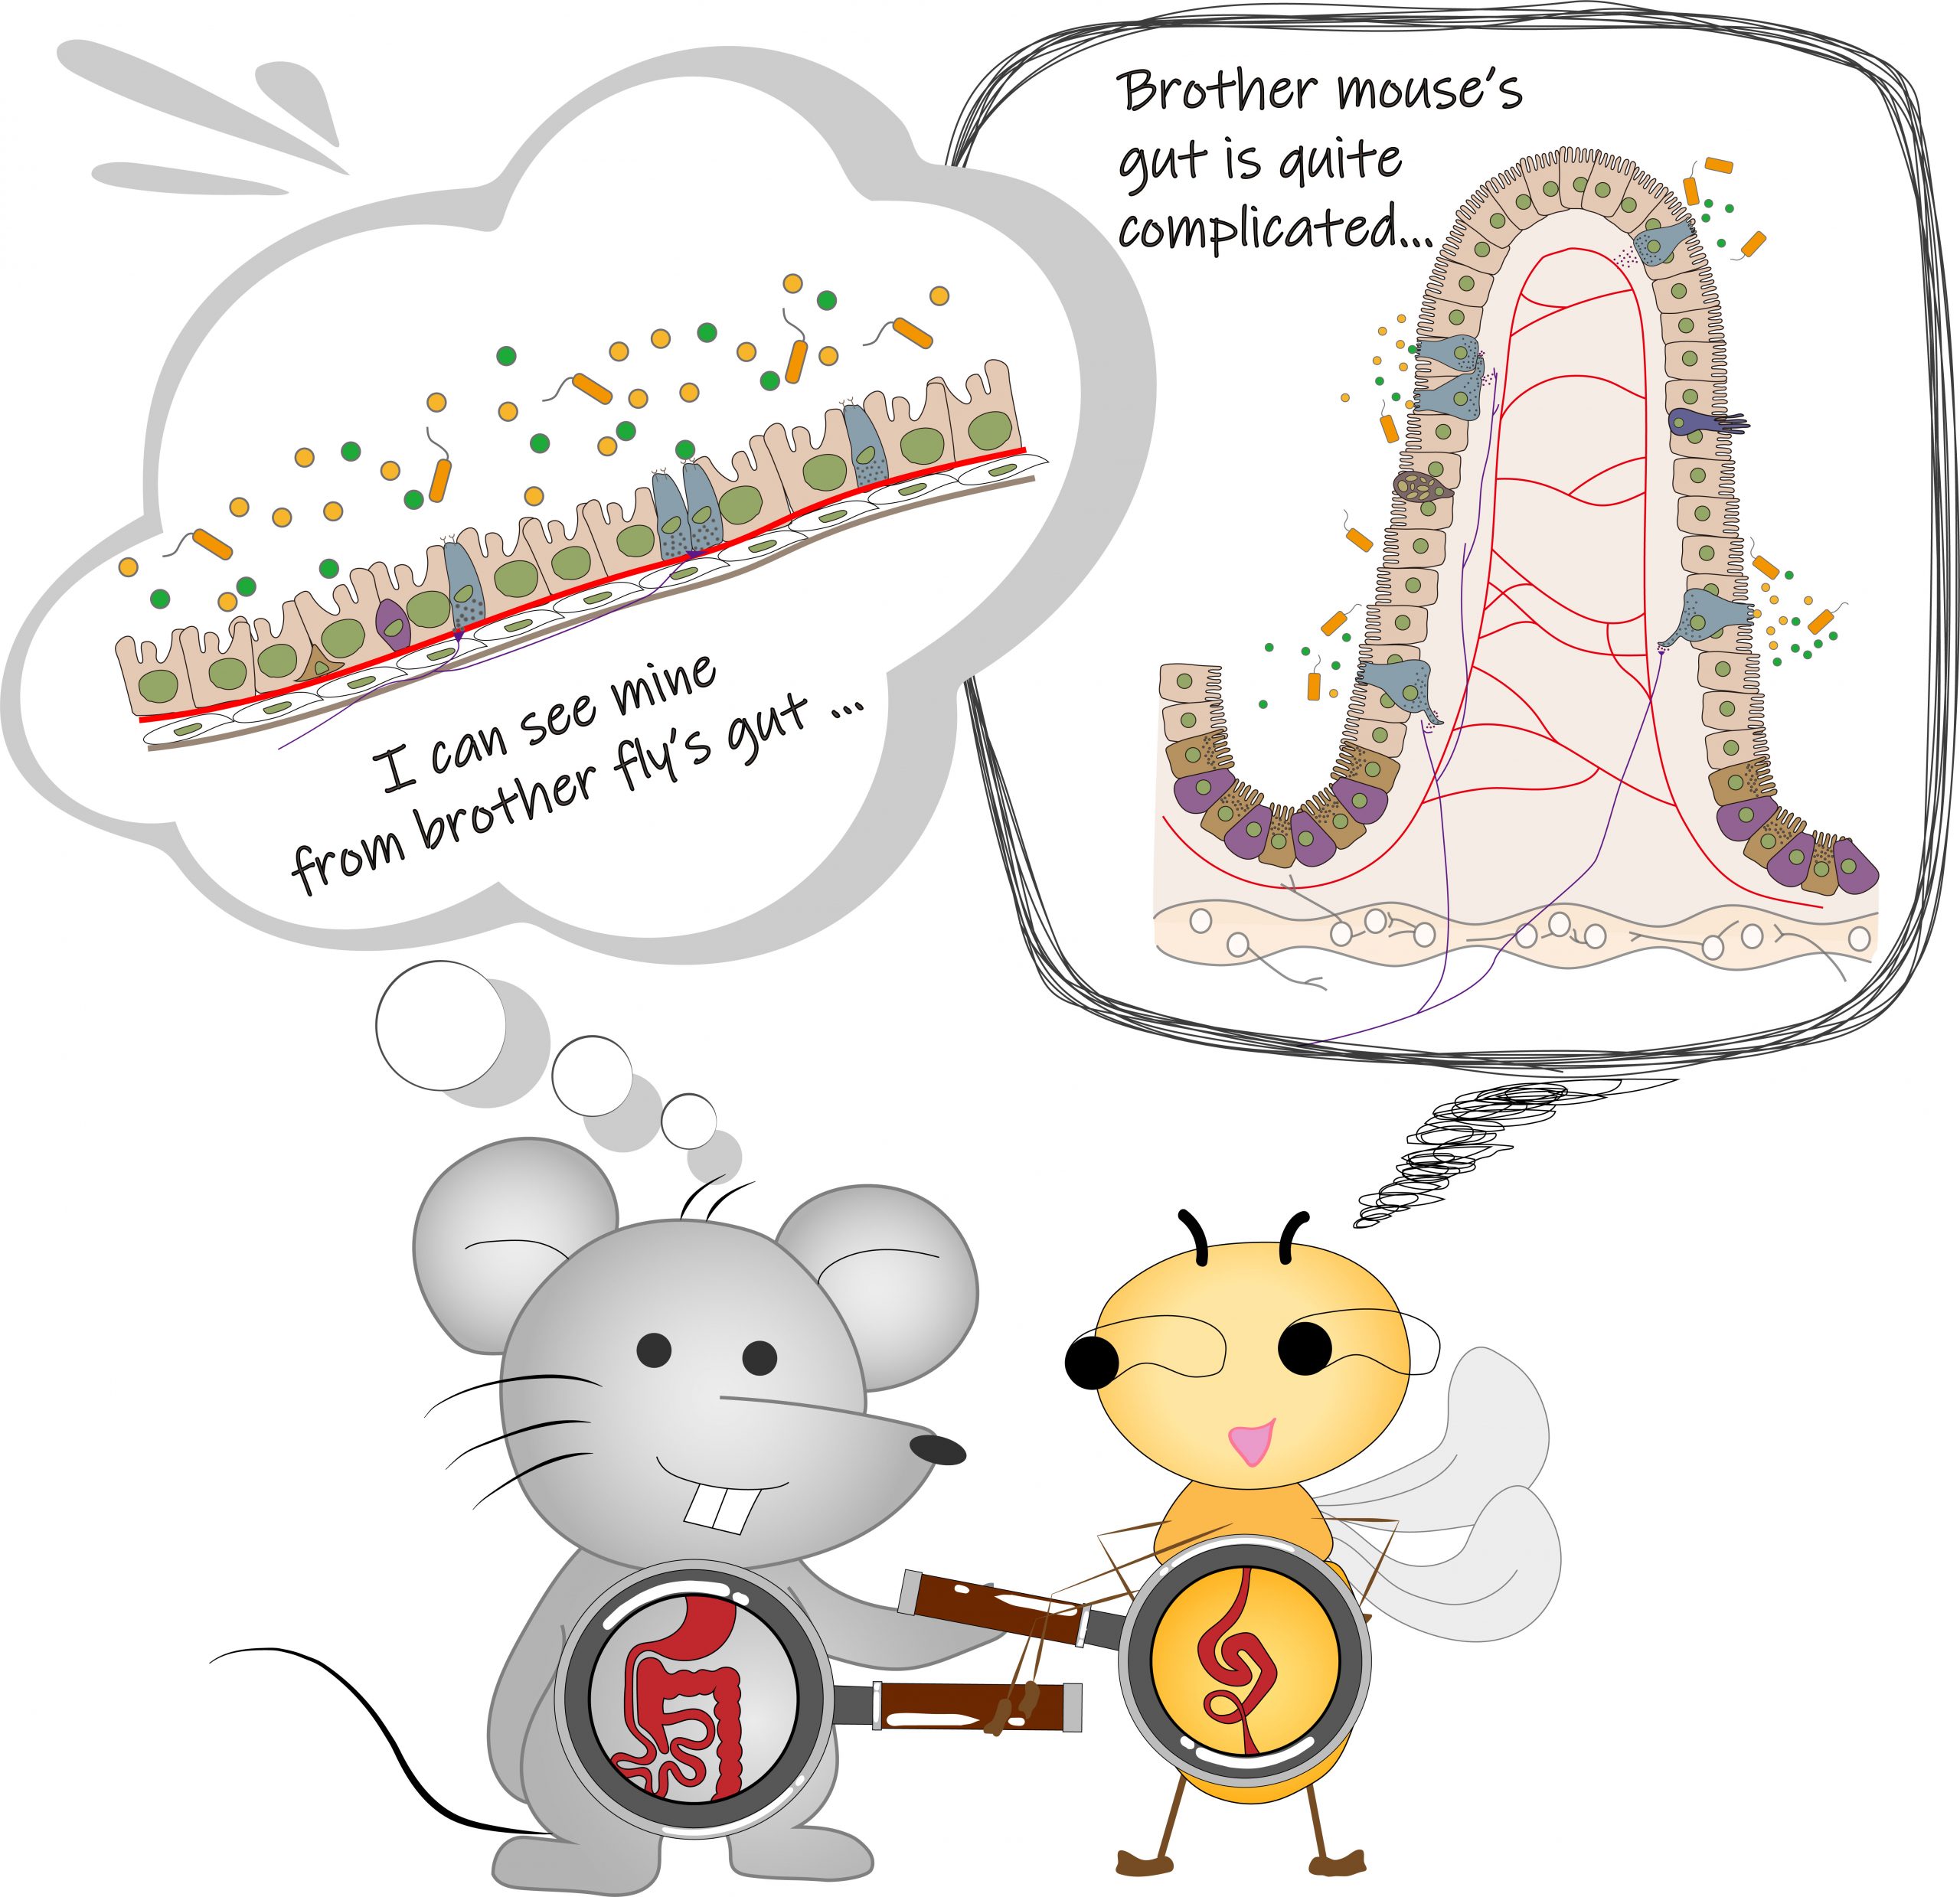
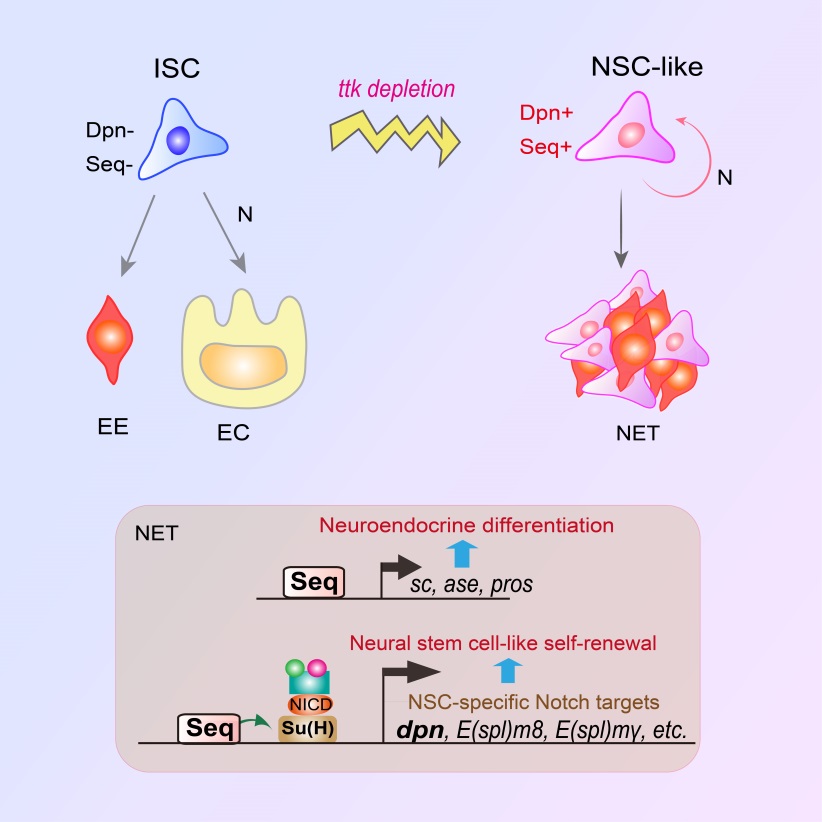
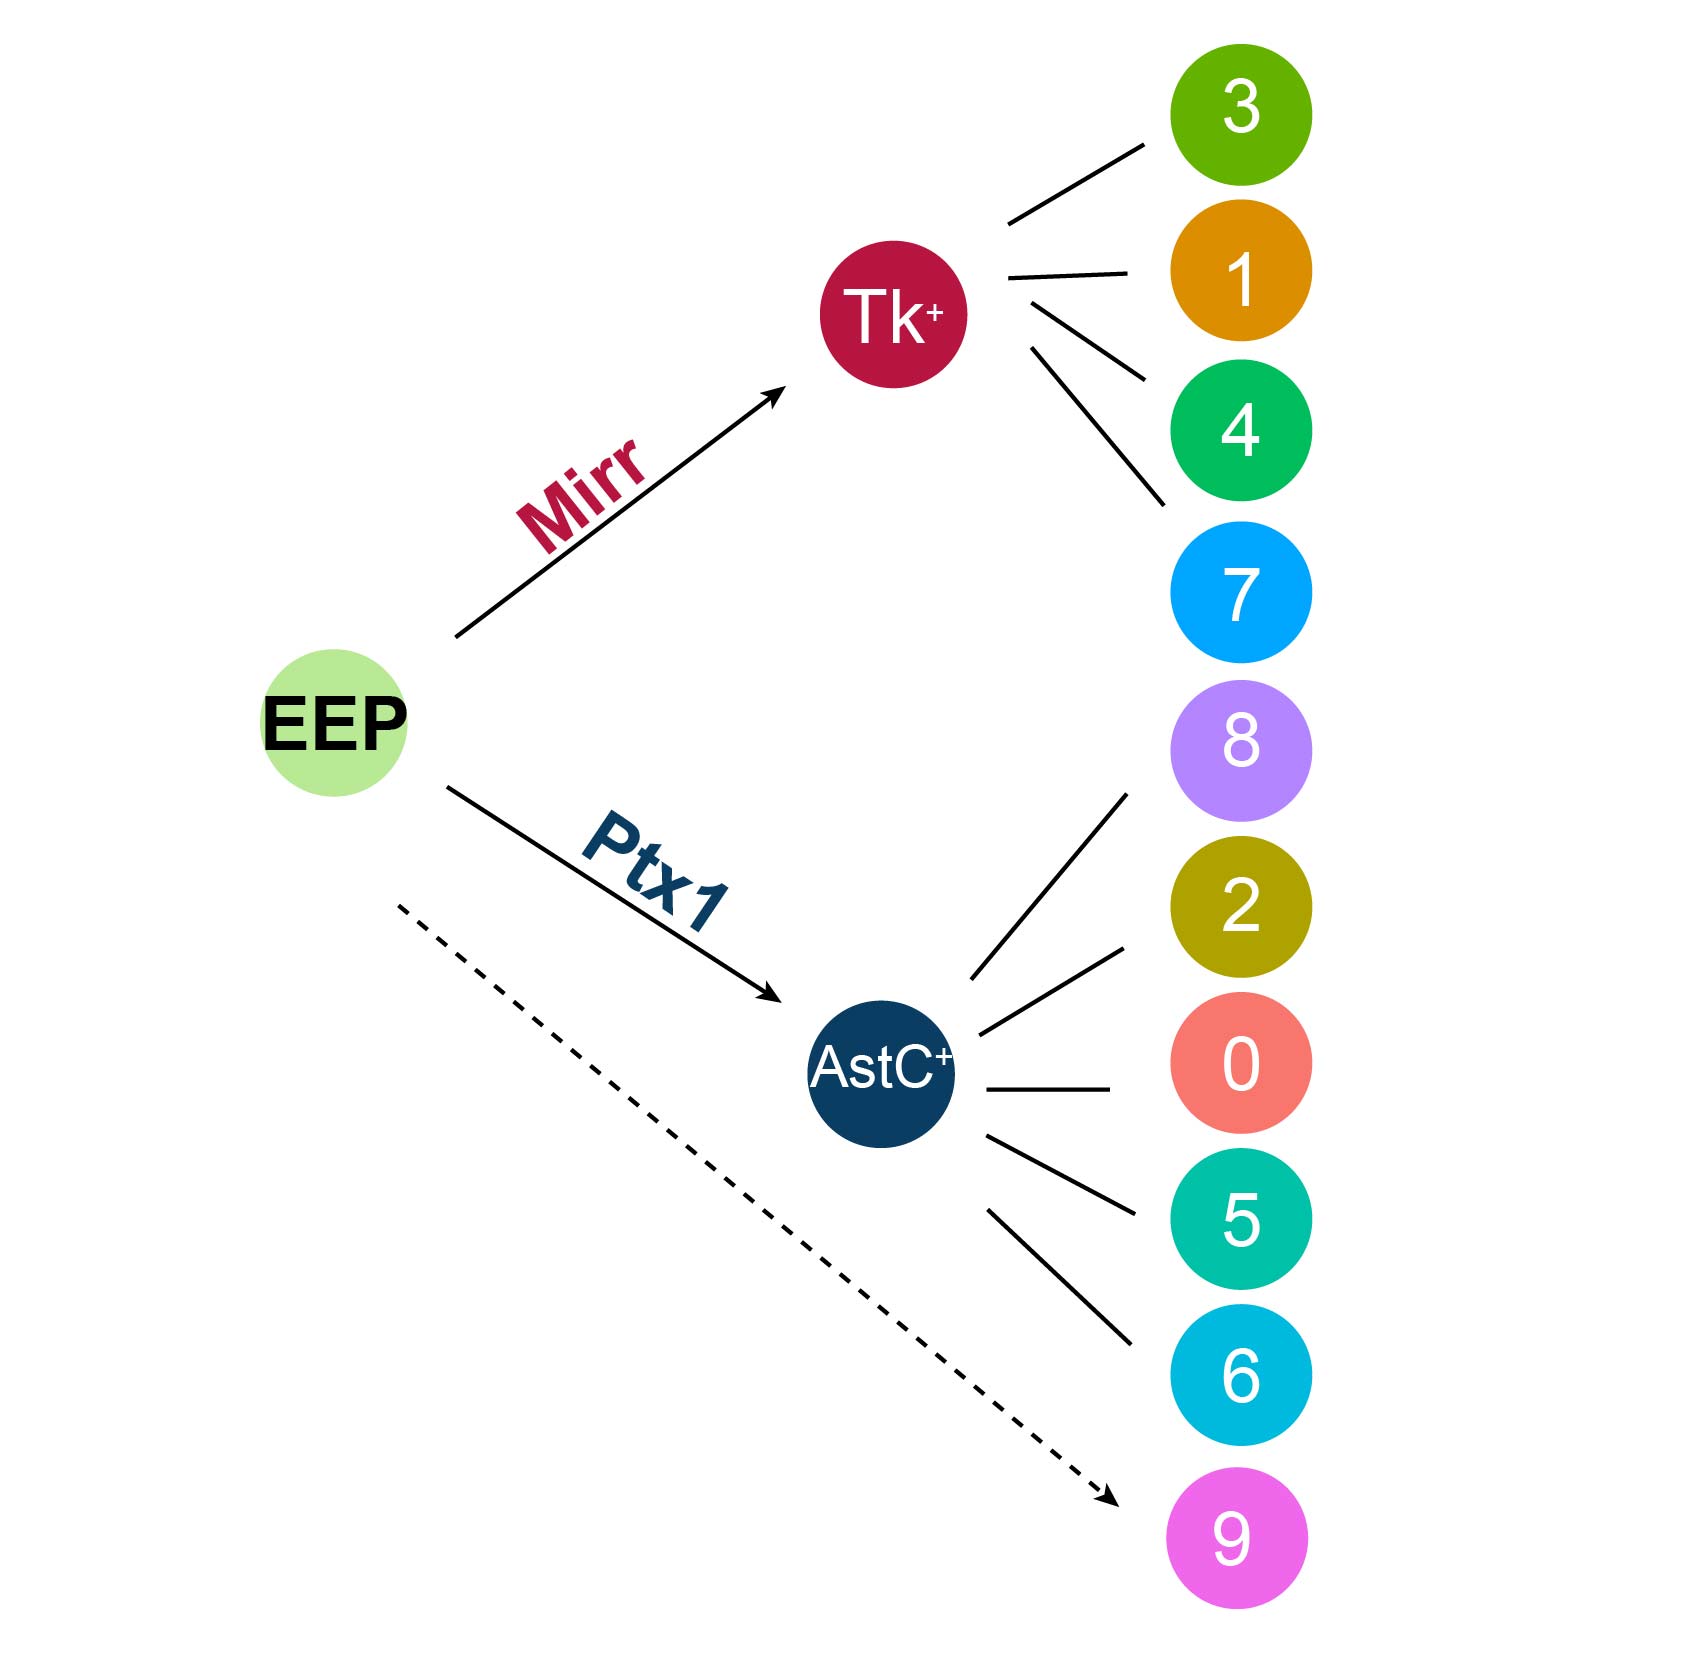
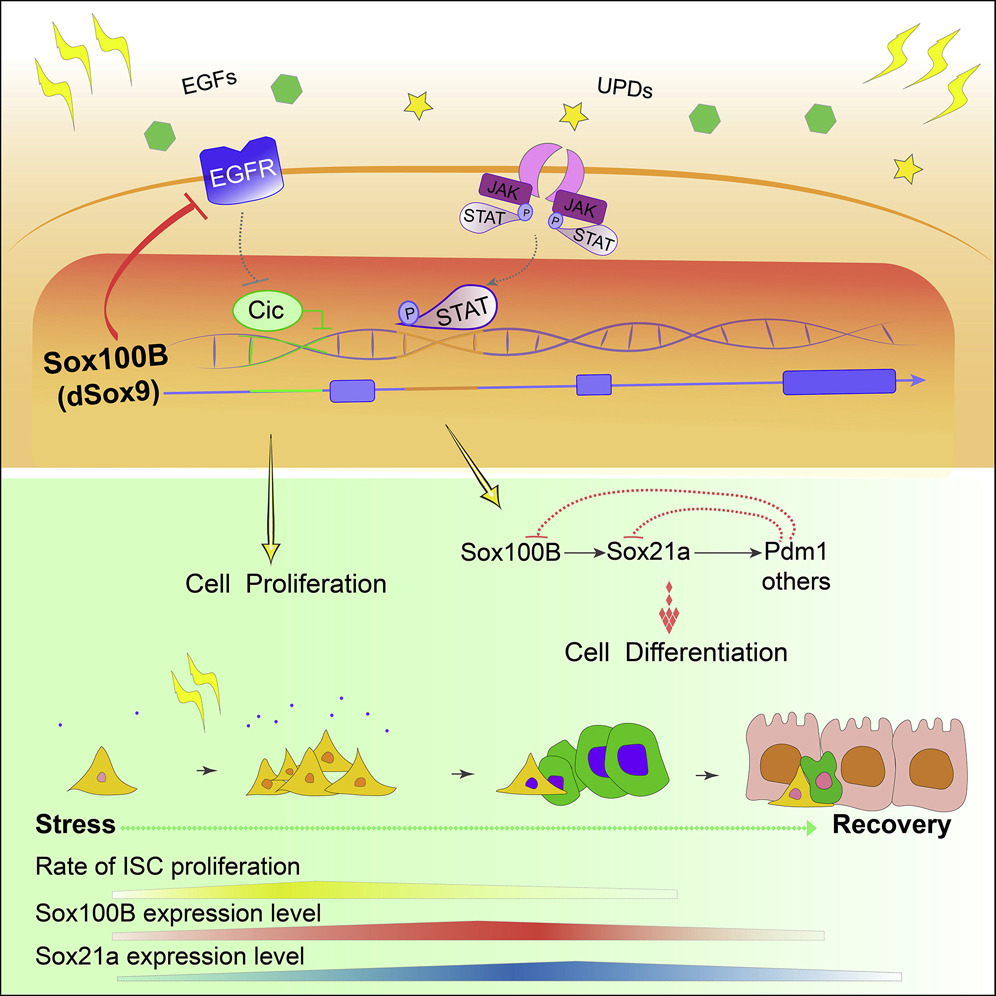
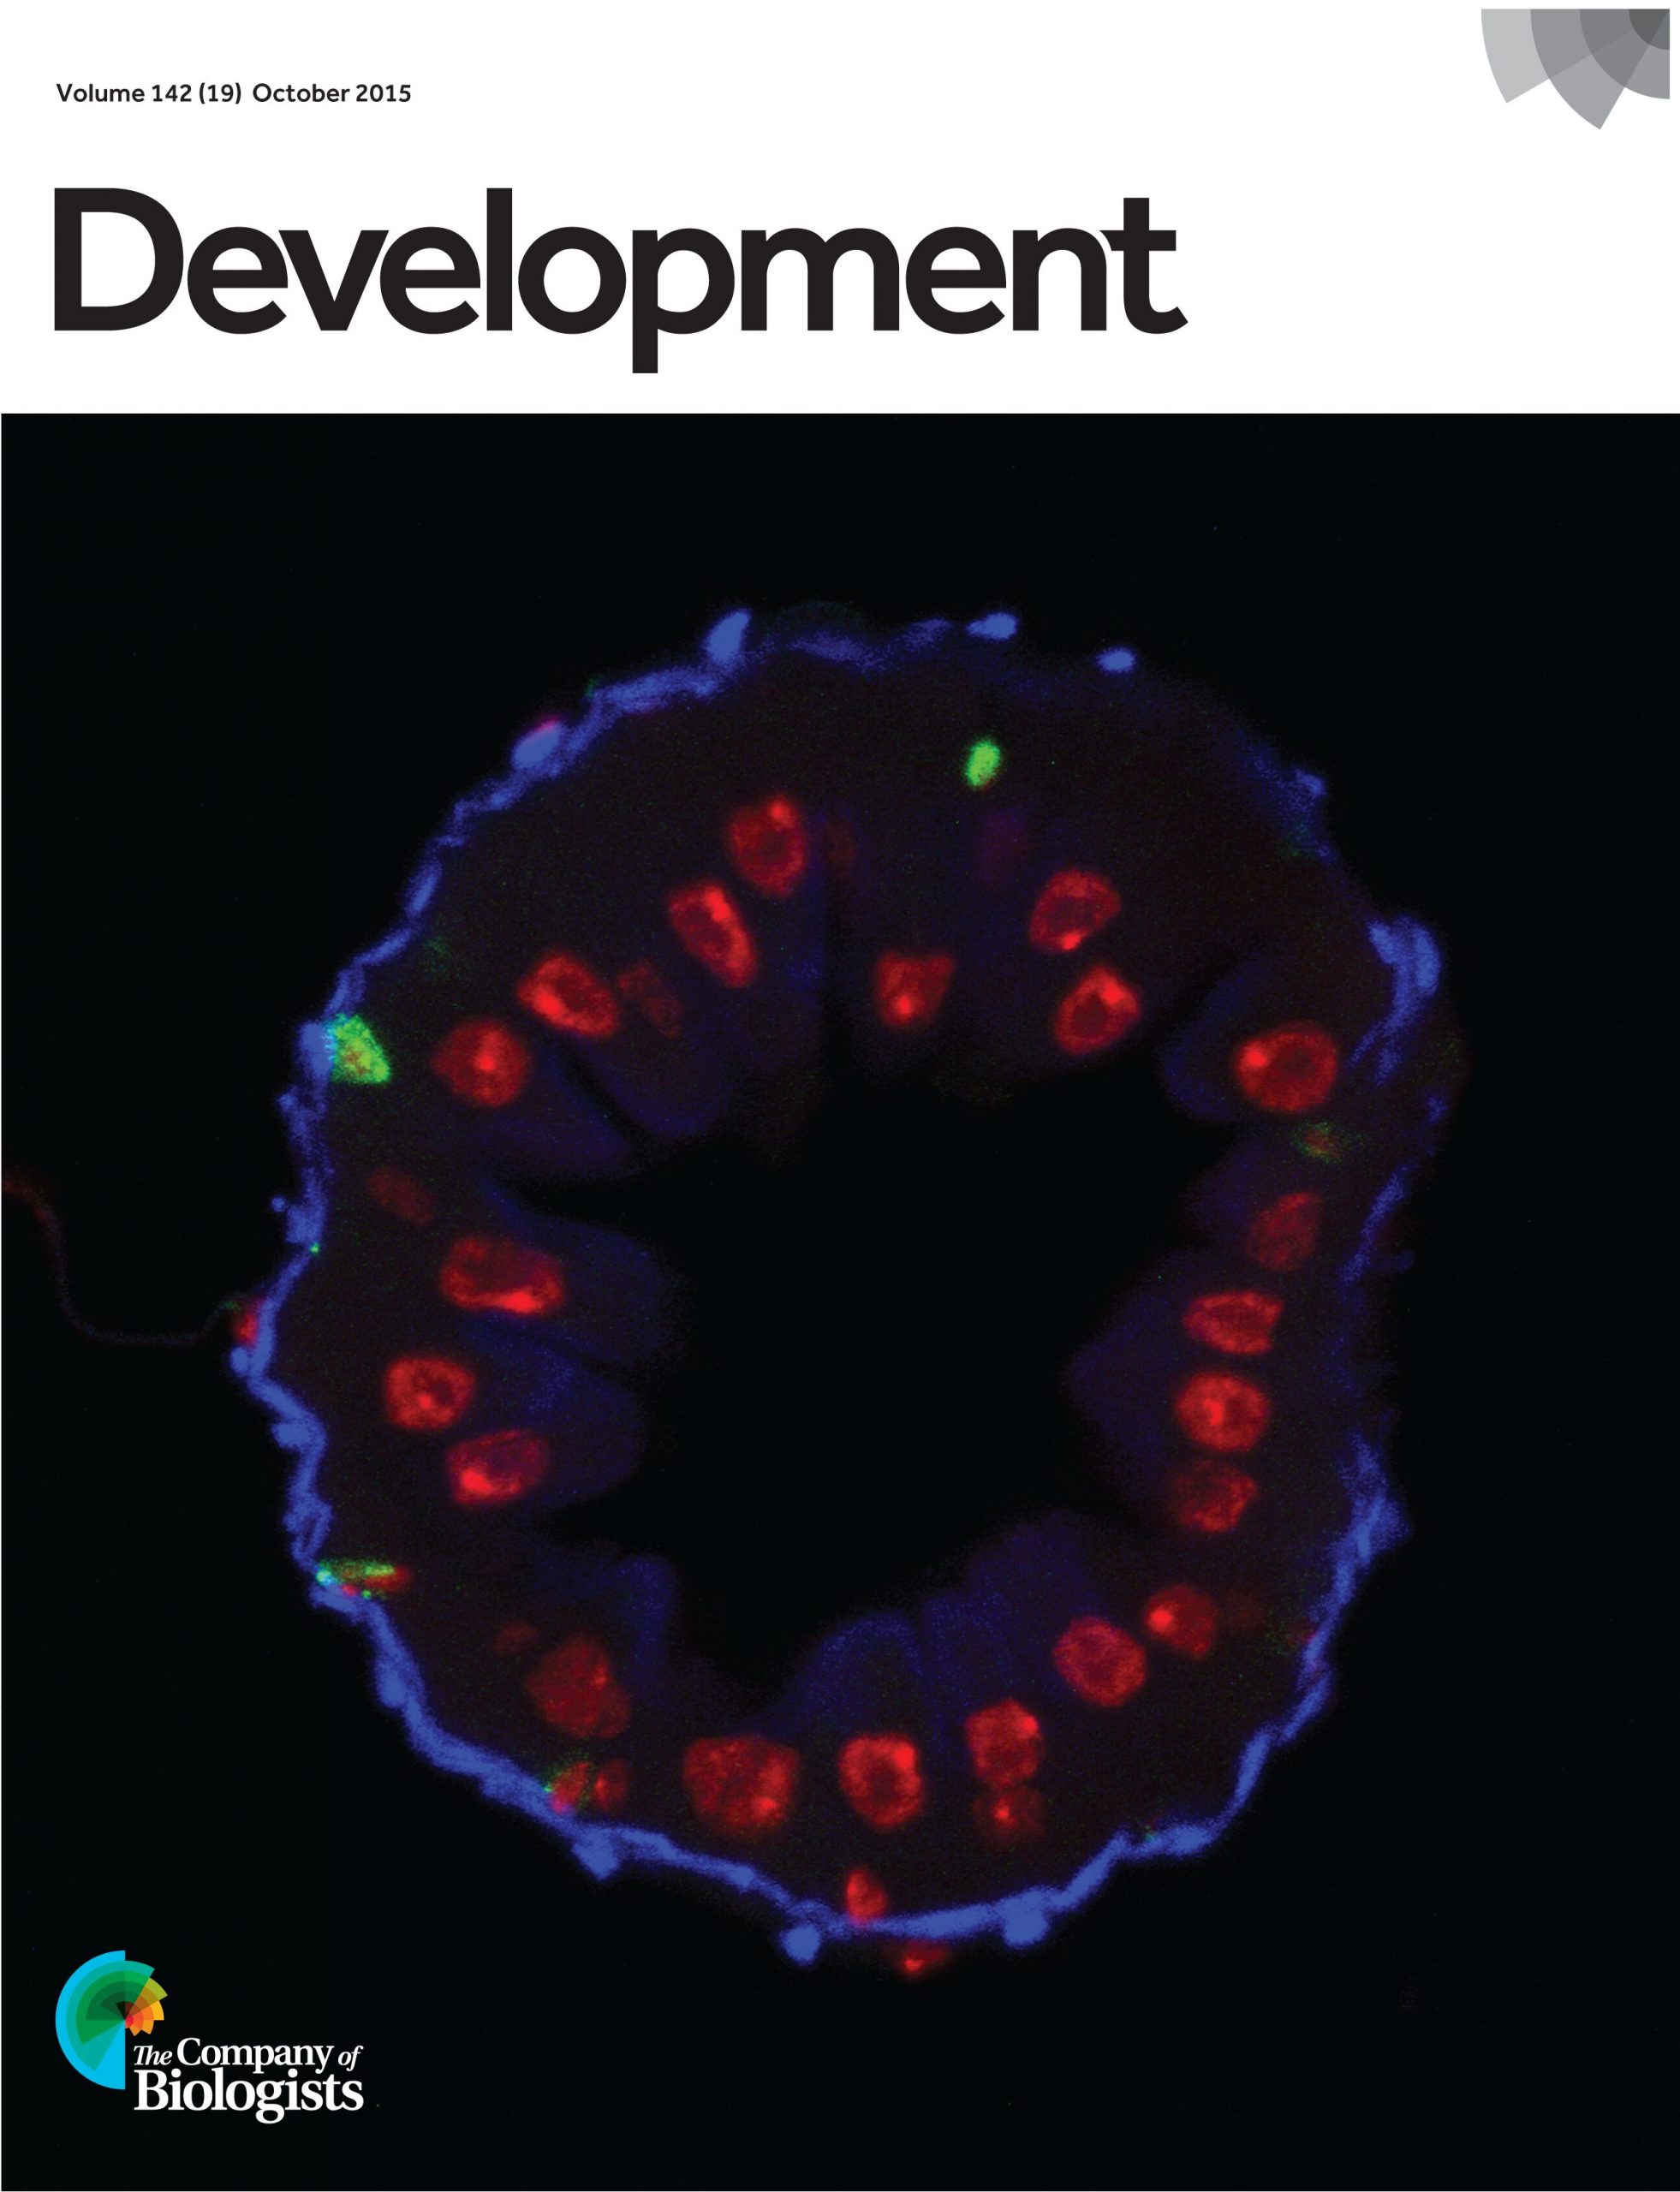
乳糖基神经酰胺通过影响Notch通路调控肠道干细胞命运抉择 通过大规模正向遗传筛选,我们发现葡萄糖基神经酰胺合酶(GlcT)—— 作为鞘糖脂(GSL)合成的限速酶,参与肠道干细胞分化时命运的抉择。在果蝇肠道干细胞谱系中,GlcT 突变导致Mac-/Lactosylceramide(乳糖基神经酰胺)缺乏,从而削弱 Notch 信号通路,进而导致肠内分泌肿瘤的形成。进一步研究发现,葡萄糖基神经酰胺合酶的同源蛋白在哺乳动物肠道中同样可调控 Notch 信号通路。该研究为后续阐明特定脂质如何调控 Notch 信号活性的机制研究奠定了基础。 阅读原文 view pdf 新型干细胞维持肠道特络细胞(telocyte)的稳态和再生 我们发现一群位于小鼠肠峡部(isthmus)的特络细胞祖细胞(telocyte progenitor cells,简称TeloPCs)负责肠道特络细胞的稳态维持和再生。在正常情况下,TeloPCs通过缓慢的增殖与迁移分化,维持隐窝和绒毛周围特络细胞的更新。当特络细胞层受损,TeloPCs可以被激活,快速修复特络细胞层,从而迅速重建肠道干细胞的自我更新与分化微环境。 阅读原文 新闻报道 view pdf 探讨细胞重编程过程中的关键障碍 实验室的博士生杨堤贻主笔,探讨了胚层内部及胚层之间、成体干细胞谱系内部及谱系之间发生的细胞重编程事件,并提出:细胞预先存在的染色质开放状态整体上的相似性,是决定一种细胞类型向另一种细胞类型重编程效率的关键因素。 阅读原文 view pdf 肠细胞的可塑性:敲除一个转录因子引发细胞命运的转分化、逆分化 在成年果蝇肠道细胞中,敲降转录因子 Tramtrack 可诱导肠细胞向肠内分泌细胞发生转分化;而在肠内分泌细胞中敲降 Tramtrack,则会促使其逆分化为肠道干细胞。染色质开放性分析显示,肠道干细胞、肠细胞与肠内分泌细胞具有相似的全基因组染色质开放区域,提示这种保守的染色质开放状态是肠道干细胞谱系细胞间具备高度细胞可塑性的重要原因 阅读原文 view pdf 肠内分泌细胞多样性的原理:一个“三位数”的编码机制 三种处于不同层级的转录因子的组合形成了一个“三位数”的编码,此编码指导并决定了果蝇肠内分泌细胞各亚型的身份。分化成熟的肠内分泌细胞仍然具有可塑性,通过改变编码中的一个转录因子的表达,可以实现肠内分泌细胞亚型之间的命运转化。 阅读原文 新闻报道 view pdf 肠内分泌细胞:小鼠-果蝇 头对头比较 肠内分泌细胞在哺乳动物和和果蝇中均有多种亚型,它们均产生多种神经肽,发挥着多种重要的生理作用。实验室的郭兴庭博士与博士生吕佳盈合作,对小鼠和果蝇的肠内分泌细胞进行了全方位的“头对头”比较:包括肠内分泌细胞的分化的机制、细胞分型、命运决定转录因子、神经肽种类、脑肠轴及已知的生物学功能等。通过比较进一步明确了果蝇的肠内分泌细胞的组成、功能和调控模式等诸多方面的相似性,提示果蝇遗传模型为进一步理解肠内分泌细胞生物学可以发挥重要作用。 阅读原文 模式图 view pdf 肠道干细胞身份的改变导致神经内分泌肿瘤的发生 转录因子Tramtrack的缺失导致果蝇肠上皮干细胞转换成了神经干细胞样细胞,进而导致了神经内分泌肿瘤的发生。该发现提示神经干细胞自我更新程序的异位激活可能是神经内分泌肿瘤的一个潜在致病机制。 阅读原文 新闻报道 view pdf 肠内分泌细胞多样性的解析 通过单细胞技术结合遗传学分析,果蝇肠内分泌细胞的亚型、分布、决定亚型命运的转录因子及信号调控机制等得到了比较系统性的解析。这些结果提示Notch 信号通路的侧抑制作用及发育过程中建立的体节身份共同决定了肠内分泌细胞的多样性。 阅读原文 新闻报道 view pdf 查看数据 干细胞的命运抉择:决定就在一瞬间 成体干细胞通常具有多能性,即能够产生多种不同的子细胞,但潜在的命运决定机制尚不清楚。这项研究发现,在果蝇的肠上皮干细胞中,一个转录因子的瞬时表达,决定了干细胞所产生的子细胞类型。 阅读原文 模式图 view pdf 刚刚好才是最好:SOX9在果蝇肠上皮稳态和再生中的作用 干细胞的自我更新与分化平衡对维持组织稳态至关重要,但其调控机制尚不明确。本研究鉴定出转录因子 Sox100B(与哺乳动物 Sox8/9/10 同源),它是 EGFR/Ras 和 JAK/STAT 信号通路的共同靶基因与核心介导因子,在果蝇肠道稳态及应激修复中协调肠道干细胞的增殖与分化。Sox100B 的表达水平呈剂量依赖性功能:敲降可通过细胞周期阻滞抑制干细胞增殖;过表达则抑制 EGFR 表达,并激活 Sox100B‑Sox21a‑Pdm1 促分化网络,同时抑制增殖并促进分化。本研究表明,Sox100B 作为应激响应信号枢纽,对维持组织稳态平衡具有重要调控作用。 阅读原文 view pdf 一个正反馈调控机制介导干细胞向肠内分泌细胞分化的执行 在果蝇肠上皮前体细胞分化为肠内分泌细胞的过程中,Phyllopod介导了一个正反馈环路,如“滚雪球”般使细胞命运的执行因子在细胞中的不断表达和积累,从而驱动了肠内分泌细胞的分化与成熟。 阅读原文 新闻报道 view pdf 干细胞与其子细胞形成的扩增环路介导肿瘤的发生 通过对果蝇肠上皮更新过程的研究,我们发现由干细胞及其未分化子代细胞构成的正反馈扩增环路,介导了肠上皮的再生与肿瘤发生。该发现为阐明再生与肿瘤的关联提供了分子机制解释:暂时性激活干细胞‑子细胞扩增环路可促进组织再生,而持续性激活则会导致肿瘤发生。 阅读原文 新闻报道 view pdf 发现果蝇肠道干细胞向内分泌细胞方向分化的关键抑制因子 我们通过遗传筛选发现,转录抑制因子 Ttk69 是调控肠道干细胞向肠内分泌细胞分化的关键抑制因子。Ttk69 基因失活可导致肠道干细胞持续增殖并向肠内分泌细胞方向分化,造成内分泌细胞在肠上皮中大量累积,进而形成内分泌细胞样肿瘤。该发现为解析肠道干细胞分化过程中的命运抉择机制提供了重要研究基础。 阅读原文 新闻报道 view pdf